摘要: iPSC向β细胞分化过程中,即使细胞已经表达PDX1、NKX6.1、胰岛素等相关标志物,也不代表其已经获得成熟β细胞完整的葡萄糖响应功能。细胞外基质不仅参与细胞黏附,还会通过整合素、极性和组织结构影响细胞命运与功能成熟。人体胰腺发育过程中,laminin组成会随着发育阶段发生变化,而全长LN521与LN511分别对应内分泌祖细胞诱导和后期极性/功能成熟等不同研究阶段。公开资料中,LN521可使NKX6.1/NEUROD1双阳性祖细胞比例较Matrigel提高20%~25%,而LN511培养的干细胞来源胰岛GSIS较悬浮培养提高3.9倍。本文从“为什么标志物阳性不等于功能成熟”这一问题出发,分析ECM、细胞极性和层粘连蛋白亚型在β细胞成熟中的作用。
关键词:β细胞功能成熟、GSIS、LN521、LN511、Biolaminin521、iPSC胰岛分化、细胞极性、细胞外基质、ECM、NKX6.1、NEUROD1、胰岛素分泌
一、为什么β细胞分化不能只看“胰岛素阳性”
在多能干细胞向β细胞分化的过程中,研究人员会使用PDX1、NKX6.1、NEUROD1以及胰岛素等标志物判断细胞是否逐渐进入胰腺和内分泌谱系,但这些分子标志物主要说明细胞身份正在向目标方向变化,并不能完整回答细胞是否已经具备成熟胰岛β细胞的功能。
真正成熟的β细胞需要能够感知外界葡萄糖变化,并根据葡萄糖水平及时释放胰岛素。因此,葡萄糖刺激胰岛素分泌GSIS比单纯检测胰岛素表达更接近成熟功能。如果一个细胞群体拥有较高胰岛素阳性比例,却无法产生合理GSIS响应,那么它仍然可能处于“β细胞样”而非真正功能成熟的状态。
这也是为什么β细胞培养方案逐渐开始关注细胞外基质,而不只是继续增加更多可溶性生长因子。BioLamina全长重组层粘连蛋白相关资料所强调的核心之一,就是利用天然组织中的ECM信号帮助细胞进一步建立结构和功能。
二、ECM为什么能够影响β细胞功能,而不只是决定贴壁
天然层粘连蛋白并不是培养皿表面的一层“胶”。完整laminin由α、β、γ三条链组成,并通过多个功能结构域与细胞表面的整合素、生长因子和其他基质组分发生相互作用。
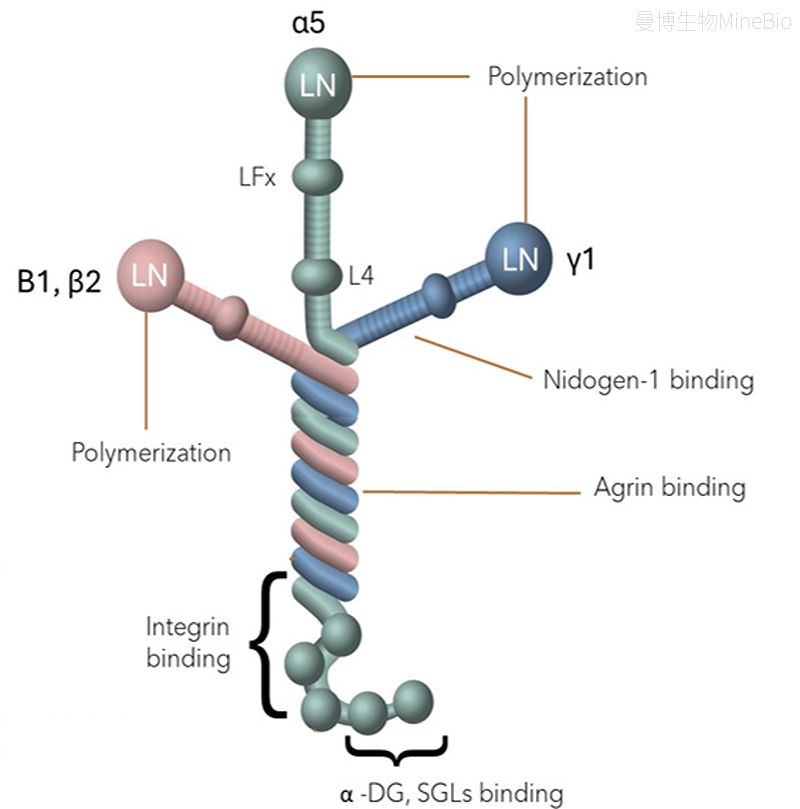
图1:全长laminin异三聚体结构保留多种受体和基质相互作用功能域
细胞通过这些相互作用能够感知外部基质组成、机械环境和空间方向,因此ECM会进一步影响细胞极性、命运选择和组织结构。对于β细胞来说,这些结构性信息尤其重要,因为胰岛本身是一个高度组织化的内分泌微环境,并不是一团随机聚集的胰岛素阳性细胞。
三、天然胰岛为什么会随着成熟更换laminin信号
人体胰腺发育数据提示,胰岛周围的层粘连蛋白组成会随发育过程发生变化。较早期阶段LAMA4相关信号更加突出,而随着组织成熟,LAMA5相关laminin逐渐成为重要基底膜组成。

图2:人体胰腺发育过程中LAMA4和LAMA5呈现阶段性表达变化
这意味着体外β细胞分化如果始终使用完全相同的基质,就无法重现天然发育中ECM逐渐变化的过程。基于这一逻辑,可以把基质也设计成分化方案中的时间变量:早期优先支持胰腺和内分泌祖细胞形成,后期再转向有利于极性和成熟功能建立的ECM环境。
四、为什么LN521首先影响的是“能产生多少正确的祖细胞”
在多阶段定向分化过程中,LN521可以从定型内胚层、胰腺祖细胞阶段持续支持至内分泌祖细胞形成。对应公开资料中,LN521条件下NKX6.1/NEUROD1双阳性细胞比例较Matrigel体系提高20%~25%。

图3:多阶段胰岛定向分化过程中PDX1、NKX6.1及终末多激素细胞相关结果
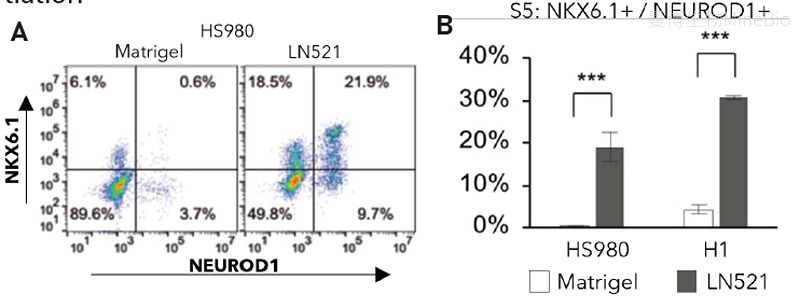
图4:LN521体系中NKX6.1/NEUROD1双阳性内分泌祖细胞比例较Matrigel提高20%~25%
这类变化的意义在于,后期能够成熟成β细胞的“起始人群”首先增加。如果内分泌祖细胞阶段就产生了大量不正确或不同谱系细胞,后续无论如何进行成熟处理,最终β细胞纯度和功能都很难达到理想状态。
因此,β细胞成熟问题的一部分实际上已经在更早的祖细胞阶段决定。
五、为什么LN511更适合放在后期,而不是一开始就与LN521竞争
当细胞已经进入胰岛内分泌谱系之后,培养目标开始改变。此时不仅需要继续维持细胞身份,还要让细胞建立成熟组织所需要的空间结构和极性。
原稿引用的研究中,全长LN511被用于分化后期,并通过细胞-基质相关信号帮助干细胞来源胰岛建立更加明确的顶-基底极性。最终功能结果表现为GSIS明显提升。
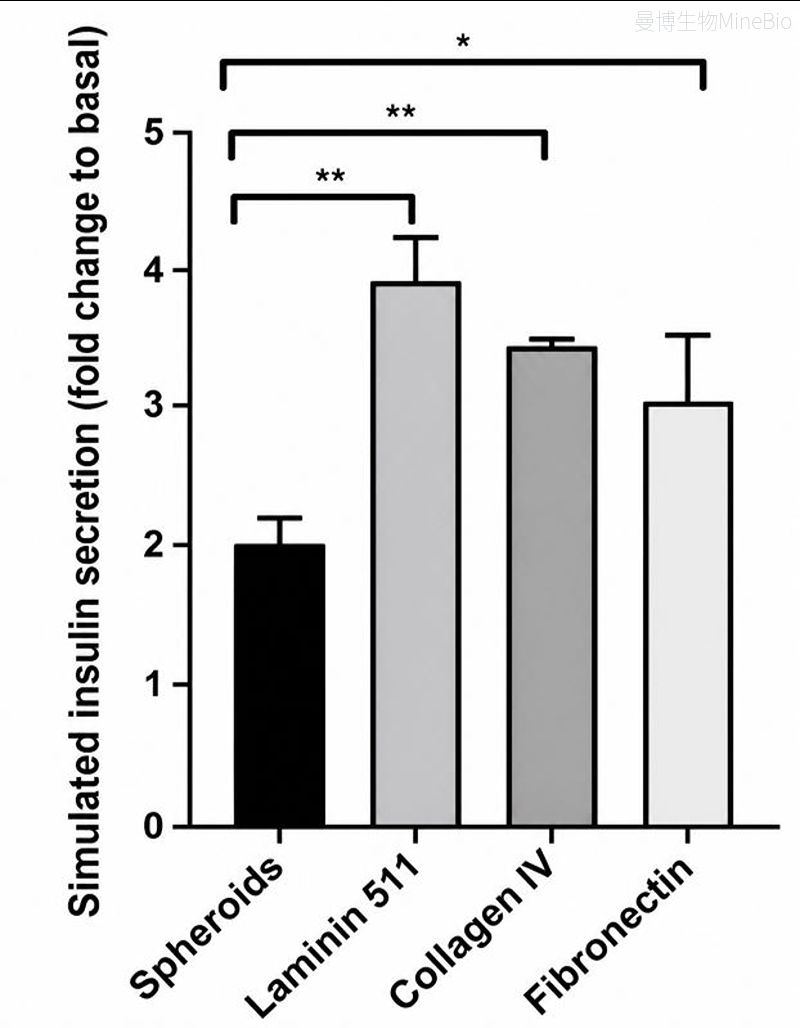
图5:LN511培养可促进胰岛细胞极性建立,对应研究中的GSIS较悬浮培养提高3.9倍
因此,LN511与LN521并不是“两个基质谁更好”的问题。LN521更偏向前期细胞命运和祖细胞产生,LN511更偏向后期组织结构和成熟功能,两种亚型对应的是不同研发阶段。
六、为什么悬浮胰岛可以有漂亮形态,却仍然功能不充分
悬浮培养能够形成圆整、紧密的胰岛样球体,因此从显微镜形态上看往往非常理想。但球体外形并不能证明内部细胞已经建立与体内胰岛相似的空间极性和ECM联系。
β细胞在天然胰岛中长期与周围毛细血管相关基底膜接触,而这种接触会参与细胞极性和内分泌功能维持。如果在体外完全失去ECM输入,细胞虽然仍然可以聚集成球,却可能缺少部分结构性成熟信号。
LN511相关GSIS结果正说明,重新给干细胞来源胰岛提供更接近天然基底膜的ECM环境,能够改变的并不只是细胞是否贴壁,而是整个组织的功能状态。
七、原代胰岛为什么进一步证明ECM并不是“分化专用工具”
如果laminin只在干细胞分化中有作用,那么已经成熟的原代胰岛理论上不应该对基质产生明显依赖。但原稿中的原代胰岛研究显示,LN521、LN511和LN411都可以影响原代胰岛的黏附、存活和体外维持。
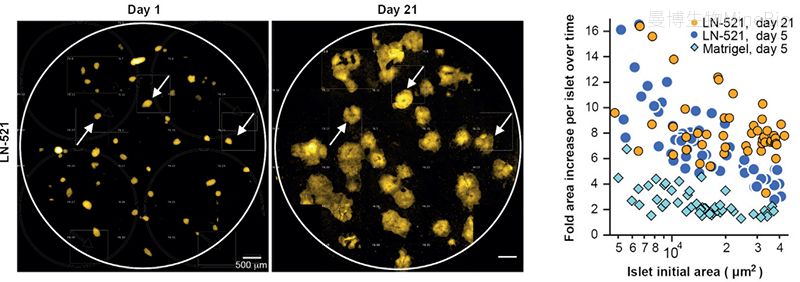
图6:小鼠原代胰岛在LN521上培养21天后,扩增面积较传统基质提高约3~4倍
这一数据说明,天然ECM信号不仅参与β细胞“形成”,也持续参与成熟胰岛“维持”。因此,对原代胰岛移植前培养、长期功能研究或疾病模型而言,包被材料同样可能成为影响实验稳定性的关键变量。
八、低氧实验为什么更能考验基质的真实功能
常规培养条件下,很多基质都能够让细胞保持一定存活,但在低氧、氧化应激等压力条件下,模型之间的差异往往更容易被放大。
原稿相关研究显示,LN521、LN511和LN411条件下的人原代胰岛在低氧环境中仍可维持较好细胞活力,并降低ROS生成,同时保持葡萄糖刺激胰岛素分泌。
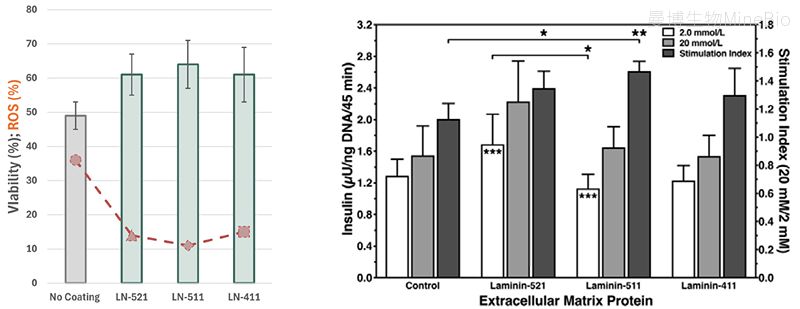
图7:LN521、LN511和LN411支持低氧条件下人原代胰岛存活、降低ROS并维持GSIS
这类应激实验相比普通贴壁率更能体现一个基质是否真正帮助细胞维持生理功能。
九、为什么Matrigel在早期科研中很好用,但后续可能出现新的需求
Matrigel能够很好地支持多种干细胞和类器官研究,因此在早期科研中应用非常广泛。但它属于动物组织提取物,组分复杂且批次之间存在天然差异,这会在需要精确定义ECM信号、长期重复实验或者后续转化型工艺开发时增加变量。
全长人重组laminin的价值并不是简单“取代Matrigel”,而是让研究人员在需要时能够把基质成分从复杂混合物转变成更加明确的单一ECM信号,并按照不同组织发育阶段选择特定亚型。
这使ECM从一个背景培养材料变成真正可设计的实验参数。
十、为什么全长和截短型laminin需要从“功能信息量”理解
截短型laminin通常保留部分重要细胞受体结合区域,因此可以很好地提供黏附支持。但天然全长laminin还存在多个参与基质组装、生长因子结合以及其他ECM相互作用的区域。
因此,当实验只需要稳定贴壁时,较简单的基质可能已经足够;当研究问题进一步涉及细胞极性、组织结构和功能成熟时,全长分子所保留的更多天然结构信息可能具有更大研究价值。
关键并不是“全长一定适合所有实验”,而是实验所需要的ECM信息复杂度不同。
十一、总结
β细胞培养中经常出现一个现象:分化标志物看起来已经不错,但GSIS仍然不够成熟。这个问题并不一定需要继续增加更多生长因子,有时还需要重新检查细胞所处的ECM环境。
LN521相关数据说明,合适基质可以在较早阶段提高内分泌祖细胞产生效率;LN511则进一步支持后期极性建立和功能成熟,使GSIS提高3.9倍;LN521、LN511和LN411对原代胰岛长期存活和低氧功能维持的支持,则说明ECM作用贯穿β细胞生命周期。
因此,β细胞分化的下一步优化方向之一,可能不是继续寻找一套从头用到尾的培养配方,而是像真实胰腺发育一样,让可溶性信号和细胞外基质都随着细胞阶段发生变化。
参考资料
拓展阅读
BioLamina全长人重组层粘连蛋白资料参考
关于技术来源
本文基于BioLamina公开技术资料及胰岛β细胞分化、ECM、细胞极性和原代胰岛培养相关研究,曼博生物MineBio整理,用于科研信息分享、实验参考和β细胞功能成熟机制理解。文中NKX6.1/NEUROD1双阳性细胞比例提高20%25%、LN511条件下GSIS提高3.9倍以及原代胰岛21天培养扩增面积提高34倍等结果均对应特定实验体系,不代表所有多能干细胞株和分化方案均获得相同结果。本文围绕LN521、LN511、β细胞分化、GSIS、细胞极性和ECM信号等方向整理相关公开技术信息。